葡萄是世界最重要的经济作物之一,也是人类最早开始驯化的作物之一。栽培葡萄以及葡萄属(Vitis)其他物种的起源和进化历史一直是进化生物学的关键问题。进化分析表明,葡萄属只是葡萄科植物漫长演化中的一个分支。葡萄科(Vitaceae)包含16属近950种,这个古老家族在约7000万年的演化过程中,不同类群逐渐分化,染色体也经历多次重排,形成了今天丰富多样的葡萄科植物,包括葡萄族(如葡萄)、蛇葡萄族(如蛇葡萄)、地锦族(如爬山虎)、乌蔹莓族(如三叶崖爬藤)和白粉藤族(如圆叶白粉藤)五个大分支。长期以来,围绕葡萄科物种的演化仍有几个问题尚未解答:葡萄科主要类群之间有着怎样的亲缘关系?葡萄科物种的祖先是谁,以及物种进化中染色体核型是怎样形成和演化的?漫长的基因组演化历史又能为今天的葡萄遗传研究和性状改良提供哪些线索?
2026年10月23日,国际著名学术期刊《Nature Plants》在线发表了由北京大学现代农业研究院、潍坊现代农业山东省实验室郭立团队、叶文秀团队与日本岩手大学、山形大学的Naomi Abe-Kanoh教授团队合作的研究论文“Chromosome-level phylogenomics and genome evolution of the grape family”。研究团队对29个葡萄科基因组(其中27个为新组装)开展染色体级系统基因组学分析,覆盖葡萄属(Vitis)、地锦属(Parthenocissus)、蛇葡萄属(Ampelopsis)、崖爬藤属(Tetrastigma)和白粉藤属(Cissus)等
5个属,并首次公布了蛇葡萄属和地锦属的染色体级参考基因组,重建了葡萄科演化关系与祖先核型,发现Helitron转座元件活动与NLR抗病基因扩张和表达密切相关,并在葡萄野生种里发现和验证了一个抗葡萄霜霉病基因VbRpv35,为葡萄抗病育种提供重要遗传资源。
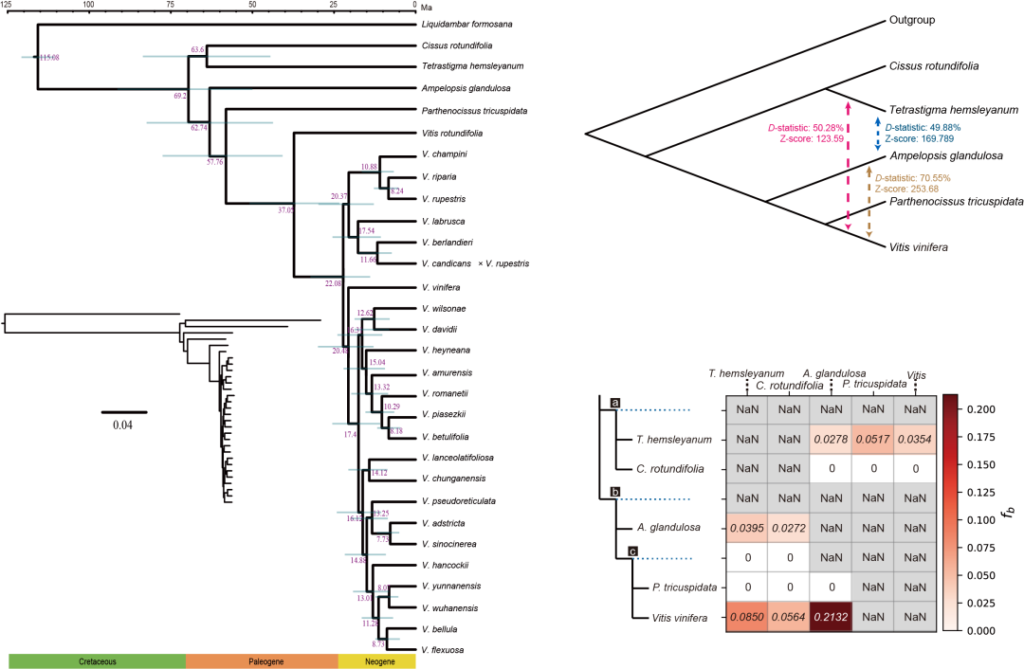
图1|葡萄科系统发育关系及谱系间基因交流。基于30个物种(含外类群)的2365个单拷贝同源基因重建系统发生树,以及通过ABBA–BABA和f-branch分析检测到不同葡萄科谱系之间的基因交流信号。
01. 使用染色体级别基因组序列重绘葡萄科“家谱”
植物进化生物学的研究,通常要先弄清楚一个基本的问题:谁和谁的亲缘关系更近?研究人员往往会借助不同物种的同源基因序列差异来推断亲缘关系。此前虽有研究基于叶绿体DNA、少数核基因及转录组数据构建了葡萄科系统发育树,但在部分分支关系上存在分歧,尤其是蛇葡萄属究竟与哪些类群更近一直是具有争议的问题。区别于以往研究,本研究利用包括外类群在内覆盖葡萄科5个大族群30个基因组的单拷贝直系同源基因构建了科级系统发育树,并结合共祖分析、基因流检测和全基因组共线性分析,发现蛇葡萄属与地锦属亲缘关系较近,且二者整体更接近葡萄属,而不是最早分化(图1)。研究还检测到葡萄属与蛇葡萄属、崖爬藤属之间存在基因流,并发现不完全谱系分选(incomplete lineage sorting)也影响了系统树冲突。通俗地说,基因流像物种间的“杂交交流”,不完全谱系分选则像祖先基因多态性在分化后“随机保留”,二者都会让“家谱”看起来更复杂。
02. 染色体,记录着另一层演化历史
染色体数目和片段排列的变化,是物种演化的重要驱动力。在漫长的演化中,染色体可能发生融合、易位等重排,并在基因组中留下可追踪的痕迹。葡萄科植物核型差异很大:葡萄属通常有19或20条单倍体染色体,蛇葡萄属和地锦属为20—40条,崖爬藤属和白粉藤属变化更大。葡萄科物种的染色体数目和结构,究竟是如何一步步形成的?研究团队以染色体级基因组为基础,比较不同葡萄科类群的染色体共线性,重建了葡萄科祖先核型及关键祖先节点的核型,推测葡萄科祖先核型(AVK)具有21条原始染色体,随后经过端对端融合、嵌套染色体融合、相互易位等事件,形成葡萄属较保守的核型,以及崖爬藤属、白粉藤属中更剧烈的重排(图2)。研究还发现一个蛇葡萄属、地锦属与葡萄属共享的端对端融合事件,支持他们关系更近。可以说,祖先染色体像一套“拼图”,不同支系在演化中发生了不同程度的“拼块重排”。
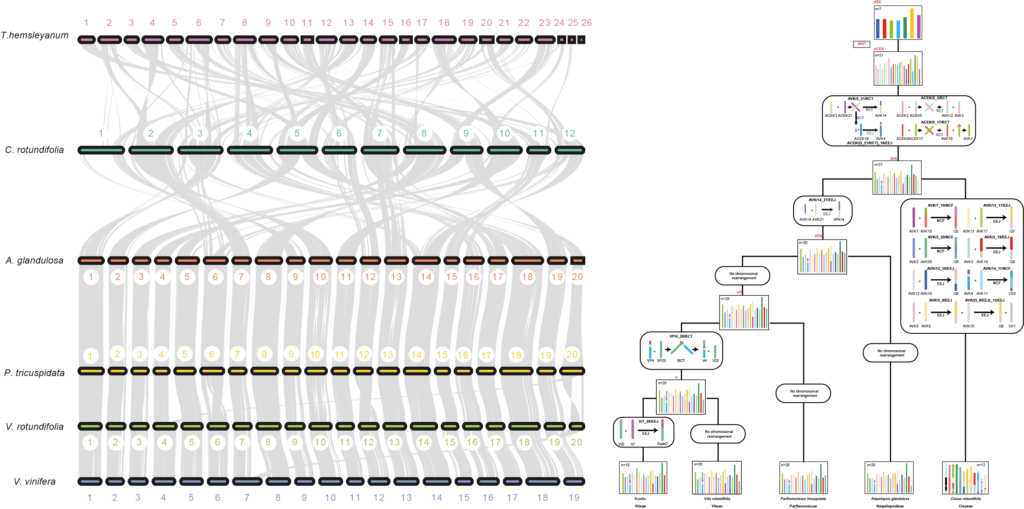
图2|葡萄科主要分支代表基因组共线性,祖先核型和染色体重排路径推断。
03. 向染色体内部看,三维结构仍在变化
染色体数目和总体结构相对稳定,并不意味着基因组内部没有变化。DNA虽然以线性序列排列,但在细胞核中会进一步折叠成复杂的三维结构,其空间组织方式可能影响基因活动。其中,A/B区室代表染色质相对活跃和不活跃的两类空间区域,而TAD(拓扑关联结构域)则是DNA片段之间接触较为频繁的局部三维结构单元。本研究涉及的葡萄属物种中,除圆叶葡萄具有20条染色体外,其余物种均为19条,且染色体整体结构较为保守。比较葡萄属基因组的三维结构,发现A/B区室和TAD边界在不同物种间存在广泛差异;部分发生区室变化的区域还富集了与次生代谢和免疫反应相关的基因。结合泛基因组结构变异分析,研究表明,尽管葡萄属染色体总体结构较为保守,其内部DNA序列和三维空间组织仍存在丰富差异(图3)。
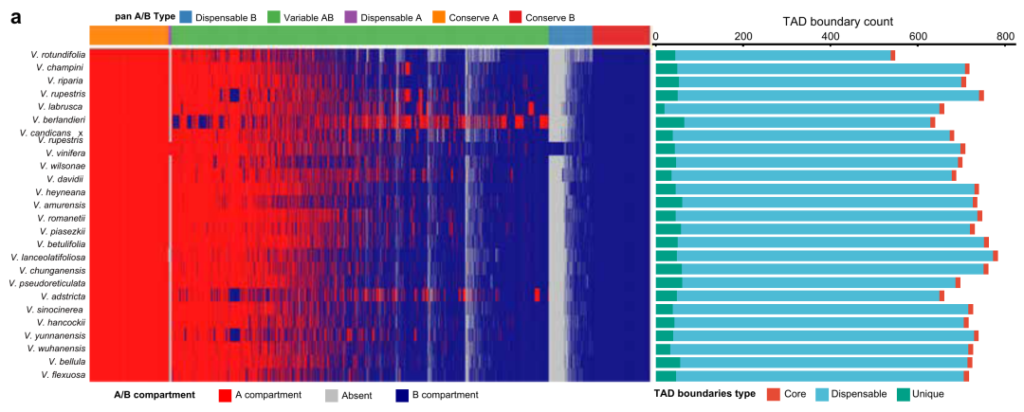
图3|葡萄属泛三维基因组景观。三维基因组的A/B区室与TAD边界在不同葡萄基因组间呈现明显差异。
04. Helitron:一类“会移动”的DNA,与葡萄抗病基因进化密切相关
植物NLR基因编码细胞内免疫受体,能识别病原菌效应子并触发免疫反应。NLR基因数目在物种间变化很快,但葡萄科中其扩张机制不清楚。研究在29个葡萄科基因组中注释到454至862个NLR基因,并发现NLR在特定祖先染色体片段上富集。更有意思的是,Helitron转座子在NLR基因附近显著富集:约40%的Helitron位于NLR基因2 kb范围内,约75%的NLR区域两侧有Helitron。这是一类通过“滚环复制”机制进行转座的DNA转座子,具有捕获宿主基因组片段并“搬运”到新位置的能力。Helitron在NLR基因附近显著富集,而其他几类主要转座元件并未呈现相同模式(图4)。进一步分析显示,NLR附近Helitron的密度与NLR表达水平存在关联:Helitron较多的区域,NLR整体上往往具有更高的表达水平。从空间富集、序列捕获到表达关联,多层证据提示:Helitron可能参与了葡萄科NLR基因的扩增与表达调控。这为理解葡萄抗病基因库如何快速演化提供了新的机制性见解。
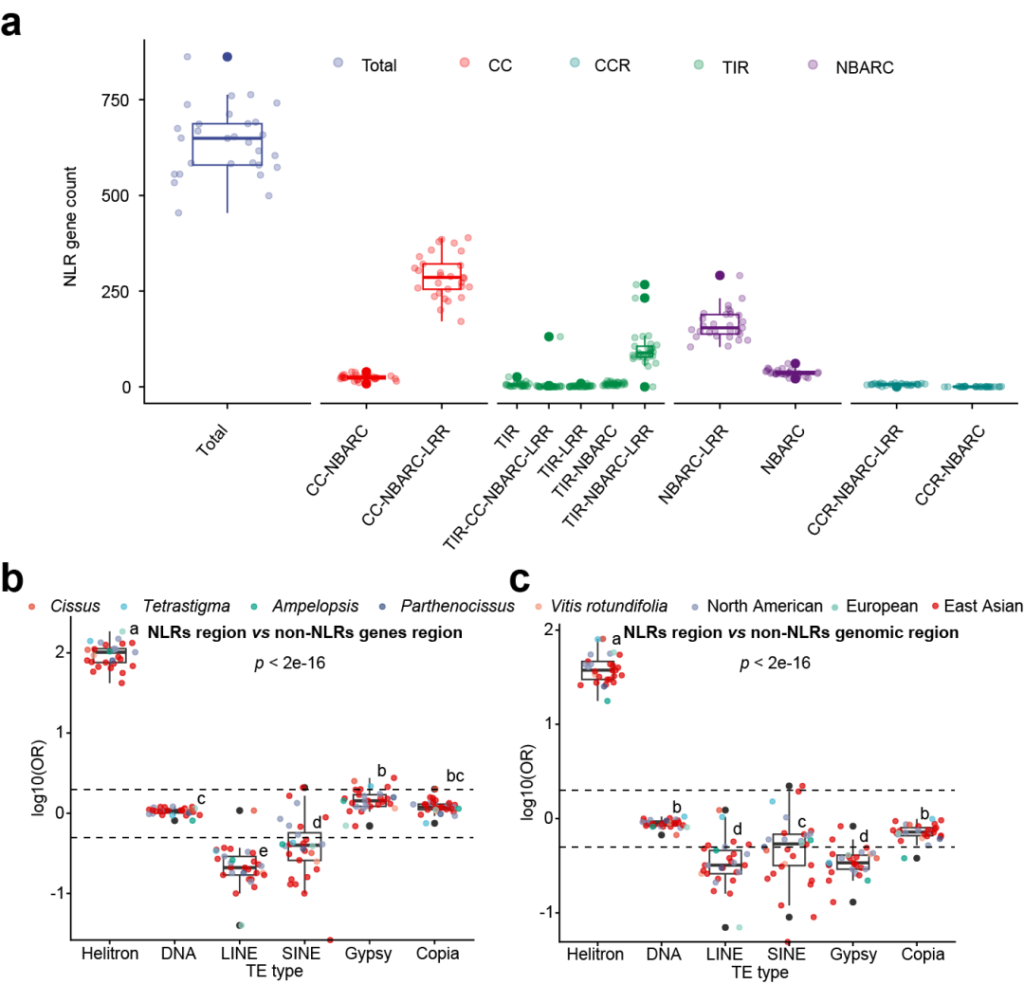
图4|Helitron转座子在NLR抗病基因区域的富集。与非NLR基因区域及基因组背景相比,Helitron转座子在NLR基因附近显著富集。
05. 从复杂的演化线索,落到一个抗病基因
这些演化信息,能否帮助我们找到抗病基因?葡萄霜霉病由Plasmopara viticola引起,是葡萄生产中最具破坏性的病害之一。某些野生葡萄具有较强的抗性,因此成为寻找抗病基因的重要资源。本研究结合局部三维基因组结构差异与病原菌侵染后的基因表达变化,在具有霜霉病抗性的野生葡萄Vitis bellula中筛选出NLR候选基因VbRpv35。该基因在病原菌侵染后表达上调,所在区域聚集了多个NLR基因,也分布着较多Helitron;在栽培葡萄V. vinifera的对应区域,则未检测到这些NLR,Helitron数量也明显较少(图5)。
本研究进一步比较了多个葡萄属物种中VbRpv35同源基因的表达水平,发现这些基因在病原菌侵染24小时后的表达水平与叶片孢子囊数量呈统计学负相关。随后,在栽培葡萄‘霞多丽’叶盘中瞬时表达VbRpv35,并接种葡萄霜霉病病原体。7天后,与空载体对照相比,表达VbRpv35的叶盘病害症状减轻,孢子囊数量显著减少,支持其具有增强葡萄霜霉病抗性的功能(图5)。
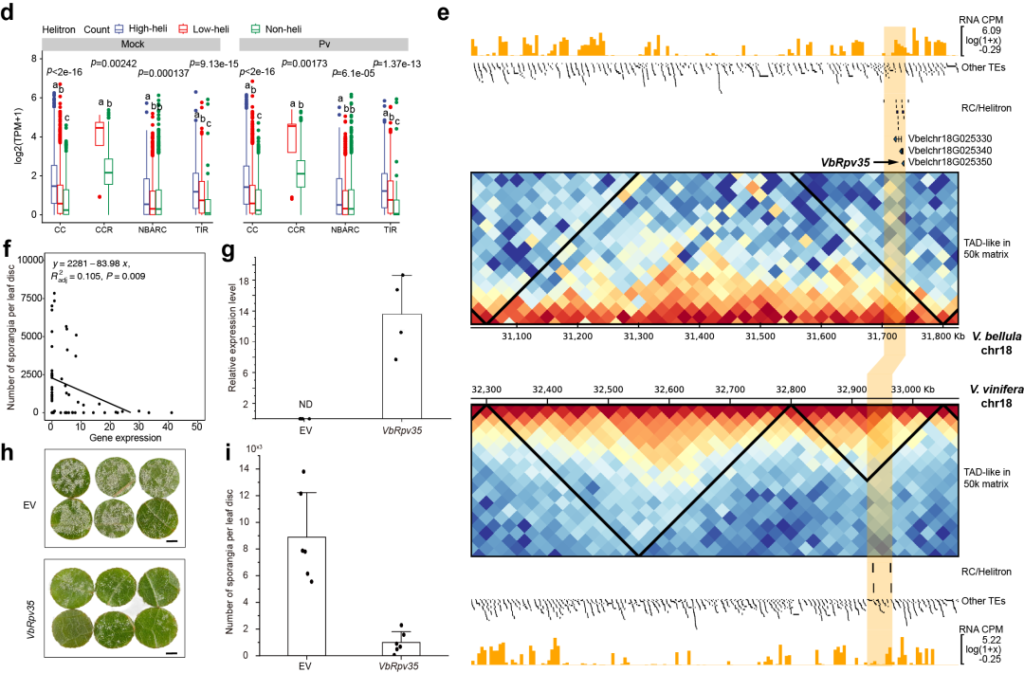
图5|野生葡萄(Vitis bellula)抗病基因VbRpv35的发现与功能验证。瞬时表达VbRpv35的葡萄叶盘病害症状较轻、孢子囊数量更少,表明其抗霜霉病功能。VbRpv35所在区域的基因组比较发现,野生葡萄与栽培葡萄在NLR、Helitron分布及局部三维结构上存在差异。
总结:从葡萄科的过去,走向抗病育种的未来
综上所述,本研究组装了覆盖葡萄科27个种的染色体级基因组,首次公布了蛇葡萄属和地锦属的染色体级参考基因组,综合使用染色体级基因组、祖先核型重建、三维基因组和转座子演化等分析,串联起葡萄科的起源、染色体演化和抗病基因演化(图6)。该研究不仅填补了葡萄科两个关键演化支的基因组空白,也展示了“基因组结构—三维调控—免疫基因扩张”之间的联系。对葡萄产业而言,这些基因组资源和VbRpv35等抗病基因为未来精准育种提供了新线索;对植物演化研究而言,葡萄科相对简单的全基因组复制历史,使其成为理解染色体重排和被子植物基因组演化的理想体系。
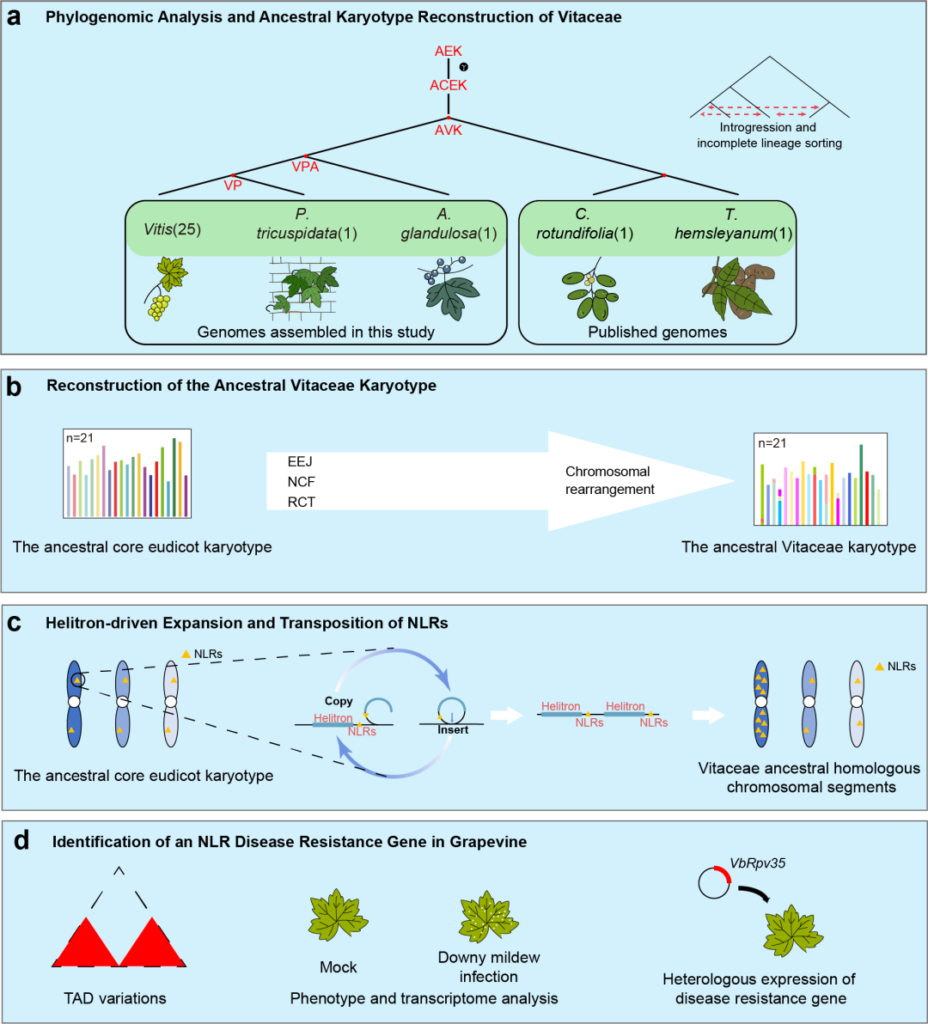
图6|本研究主要发现总结:从葡萄科系统发育(a)与祖先核型重建(b),到Helitron–NLR关联(c)和VbRpv35功能验证(d)。
北京大学现代农业研究院、潍坊现代农业山东省实验室、潍坊市葡萄种质创新与利用重点实验室的郭立研究员、叶文秀研究员,以及日本岩手大学、山形大学的Naomi Abe-Kanoh教授为该论文的共同通讯作者。北京大学现代农业研究院的科研助理王祥锋为论文第一作者,科研助理孙杰、王靖萱、张雪楠、陈绍英、国林领,实习生张新河、梅俊杰、郑伟,王可(联培研究生),访问学者Falak Sher Khan、助理研究员孙海生、金京运,以及中国农业科学院郑州果树研究所的刘崇怀研究员参与了研究。该研究得到了北京大学现代农业研究院高性能计算中心和中国科学院智能科学家平台的技术支持,以及山东省重点研发计划、山东省自然科学基金、泰山学者项目和山东省自然科学基金杰出青年项目的资助。